
 by
Glikoliz ( Embden – Meyerhoff ) : Glikoliz , çoğu hücrede gerçekleşen ve glikozu parçalayarak enerji açığa çıkaran, daha sonra ATP’de depolanan 10 kimyasal reaksiyon dizisidir . Bir molekül glukoz (artı koenzimler ve inorganik fosfat ); iki molekül pirüvat (veya pirüvik asit) ve iki molekül ATP üretir. Pirüvat, yeterli oksijen varsa trikarboksilik asit döngüsüne girer veya yoksa laktik asit veya etanole fermente edilir . Böylece glikoliz, hücresel enerji gereksinimleri için ATP ve diğer hücresel ürünlerin sentezi için yapı taşları üretir.
Kanser hücrelerinde daha da önemli olan, GLİKOLİZ‘in ( EMBDEN – MEYERHOF ) tam olarak anlaşılması ve keşif çalışmaları 20. yüzyılın başlarına uzanır. Bu konuda karşımıza 3 değerli bilim adamı çıkar. Bunlar : EMBDEN, MEYERHOF ve HİLL‘dır.
Gustav Georg Embden ( 1874, Hamburg – 1933, Nassau, Almanya) karbonhidrat biyokimyası üzerine ve metabolizma – kas kasılması , glikojenin laktik aside dönüşümünde yer alan tüm adımları keşfeden ve birbirine bağlayan ilk kişiydi. Alman Biyokimyacıdır. EMBDEN ismini glikolize vermiştir ( Embden Meyerhof ). Nobel ödülü alamasa da, 8 kez aday gösterildi.
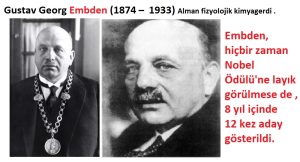
Resim 1 : Embden ve Meyerhof.
Otto Fritz Meyerhof (1884, Hannover, Almanya -1951, Philadelphia , Pennsylvania , ABD) Alman biyokimyacı ve İngiliz Fizyolog Archibald V. Hill ( 1886-1977 ) ile birlikte metabolizmanın kimyasal reaksiyonları üzerine yaptığı araştırmalar nedeniyle 1922 Nobel Fizyoloji Tıp Ödülü’nün ortak sahibiydi . MEYERHOF ismini glikolize vermiştir( Embden Meyerhof ). Kaslar üzerine yaptığı çalışmalar, glikojen-laktik asit döngüsüne ilişkin araştırmalarıyla, daha sonraki araştırmalar sonucunda yapılan revizyonlara rağmen, kas hareketinin anlaşılmasına temel bir katkı olarak kalmıştır.Kendi adını verdiği ( Meyerhof ) glikoliz’i bulmuştur.
Resim 2 : AV Hill.
Gliko-liz her ne kadar kelime anlamı olarak glukoz’un parçalanması, yıkılması, katabolizması anlamında gibi algılansa da, glikoliz anabolik hormonların ( insülin ) etkisi altındadır, fakat sonucu itibariyle katabolik bir süreçtir. Aslında vücutta tüm reaksiyonlar ve döngüler birbirlerini etkilerler.
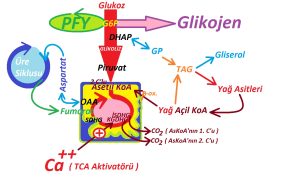
Şekil 1A : Vücutta birbirini etkileyen reaksiyonlar.
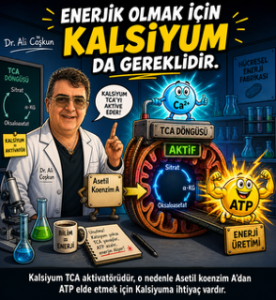
Şekil 1B : Kalsiyum TCA aktivatörüdür.
Glikoliz’inhikayesini kısaca akılda kalması için küçük bir paragrafta anlatmak istersek sanırım şöyle olabilir : Glukoz hücre içinde önce fosforlanır ( Glukoz 6 Fosfat ),fosforlanan şeker hücre dışına çıkamaz. Fruktoz da olsa fosforlanır ( Fruktoz 6 fosfat ), hatta daha çok fosforlanır ( Fruktoz 1,6 difosfat ), bu çokluktan sonra bir azlık olur ve karbon sayısı 3’e düşer GA3P ( Gliseraldehid 3 fosfat ) olur, bu azlıktan sonra daha çok fosforlanma olur( 1,3 difosfogliserat ), sonra giderek yer değiştiren bir fosforlanma olur( önce 3-fosfogliserat, sonra 2-fosfogliserat ), sonra birden enerji yükselmesi olur( fosfoenol piruvat ), sonra enerjisini geri dönüşümsüz kaybeder Piruvat olur, pencereleri kapatırsak, içeri oksijen girmez ise ( anaerobik ortam ) laktat olur.
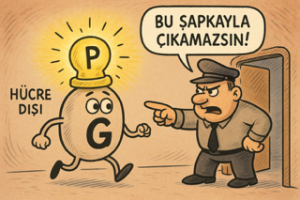
Karikatür 1 : fosforlanan şeker hücre dışına çıkamaz.
Glukoz kullanımında en önemli yol olan GLİKOLİZ, yukarıdaki şekilde özetlenebilir ve sitoplazma’da ( sitozol ) meydana gelir.Glikoliz’in aerobik ve anaerobik olmak üzere iki şekli vardır. Aerobik Glikolizdeki son basamak piruvat, anaerobik glikolizde ise son basamak laktat’dır. Glikoliz, en olumsuz koşul olan anaerobik koşullarda bile organizmaya ATP üretir yani enerji sağlar. Bu çok önemlidir. Böylelikle sınırlı iskemi’de bile yani geçici olarak hücreye oksijen girişinin kesintiye uğramasında bile, o hücre grubu anaerobik glikolizle de olsa yaşamını idame ettirebilir, canlı kalabilir. Sonuçta iskemi geri dönebilir. Ama sonuç enfarktüs olursa bu olay en azından tutulan hücre grubu için geri dönüşümsüzdür.
Glikoliz kanserli hücrelerde de normal hücrelerden farklılık gösterir. Aşağıdaki şekilde normal ve kanserli hücrelerdeki Glukoz’un kullanılma tercihleri gösterilmiştir.Kanserli hücre, mitokondrisi olduğu halde Krebs siklusunu ve oksidatif fosforilasyonu daha çok enerji üretmesine ( 34 ATP ) rağmen kullanmaz, çünkü uzundur. Onun yerine çok daha hızlı ama çok daha az enerji veren glikolizi ( 2 ATP ) kullanır.
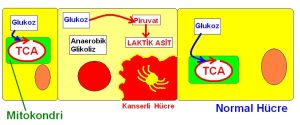
Şekil 2 : Kanserli hücrelerde laktat oluşumu.
Kanserli hücrelerde faaliyet çok arttığı için, o hücreye oksijen yetişemez, bir nevi iskemik bir durum söz konusudur. Bunun sonucunda da anaerobik glikoliz meydana gelir. Eğer hücrenin hayatının idamesi anaerobik glikoliz yolu ile karşılanacaksa, aerobik ortama göre daha fazla glukoz harcanır. Aşağıdaki tablo bize glikoliz’e genel bir bakışı göstermektedir.Kanserli hücre metabolizması için bu konuda derlediğim makale olan Kanser tedavisinde alkalizasyon tedavisinin klinik incelemesi
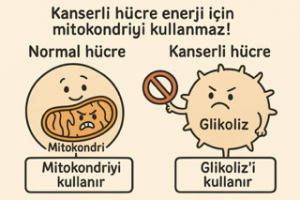
Şekil 3 : Kanserli hücrelerde mitokondrideki TCA siklusu kullanılmaz.
Aerobik Glikoliz 10 basamaktan, anaerobik glikoliz ise 11 basamaktan oluşan reaksiyonlar dizisidir. Aerobik glikolizde İlk 5 basamak’da enerji harcanarak, ileriki basamaklarda ( 5. Basamaktan sonra ) bu yolla kazanılacak enerji için yatırım yapılır. Tıpkı bir inşaat müteahitinin önce para harcayarak, temel atıp satmak istediği binayı ortaya çıkarması gibi, önce bu reaksiyonları sürdürebilecek kadar enerji sarfedilir ( 2 mol ATP ). Aerobik glikoliz’de piruvat’a kadar olan son 5 reaksiyonda ise üretilen enerji ortaya çıkar ( 2 mol NADH2 ve 2 mol ATP ).
Yine müteahhit örneğine dönersek artık binadaki katların satılmasına sıra gelmiştir ve müteahhit önce harcadığından çok daha fazlasını kazanır. Yani ikinci 5 basamaklı reaksiyonda ise artık enerji elde edilir. Ortamda yeterince oksijen yoksa anaerobik glikoliz için son basamak olan 11. Basamak meydana gelir ve laktat oluşur. Fakat burada da 2 mol NADH2 harcanır. Yeri gelmişken şu duruma dikkat çekelim : ATP, GTP gibi fosfatlı enerjiler hemen enerji olarak kullanılabilirler, oysa NADH, FADH gibi moleküller ise bu halleriyle enerji olarak kullanılamazlar, öncelikle mitokondri içine girmek zorundadırlar. Burası unutulmasın, ileride daha da teferruatlı olarak anlatılacaktır.
Glikolizde 3 önemli enzim tek yönlü reaksiyonları kataliz eder. Bunlar KİNAZ enzimleridir : Hekzokinaz ( glukokinaz ) , Fosfofruktokinaz ve PEP’den Piruvat oluşturan Piruvat Kinaz enzimleridir. Bu reaksiyonlar İRREVERSİBLE’dır.Aşağıdaki şekil’e bakılırsa, başka bir ifadeyle glikolizde tek yönlü reaksiyonlar kinaz enzimleri tarafından katalize edildikleri gibi, bu reaksiyonlar başka bir deyişle : iki glukoz arasındaki, iki fruktoz arasındaki ve iki piruvat arasındaki reaksiyonlardır.
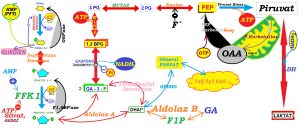
Şekil 4 : Anaerobik Glikoliz’in reaksiyonları.
Bir kaç cümle de NAD ve FAD’den bahsedelim.Her ikisi de ATP ve GTP’den çok daha fazla enerji toplarıdır ama bu haliyle değil. Bunların enerji oluşturabilmesi ve yakıt olarak kullanılabilmesi için, Mitokondri içine girip oksidatif fosforilasyona katılması lazımdır. Örneğin olgun eritrositlerde mitokondri olmadığı için böyle bir şansları yoktur. NADH ; ATP ve GTP’den 2.5 kat fazla enerji üretirken ; FADH ise , ATP ve GTP’den 1.5 kat fazla enerji üretir, fakat mitokondriye girip oksidatif fosforilasyona katılırlarsa.
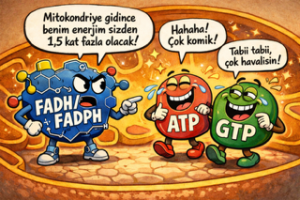
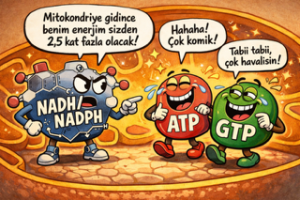
Karikatür 2A : Enerji değerlerinin kıyaslaması.
Anaerobik ve aerobik glikolizdeki reaksiyonlar’ın çoğu aynı enzimle reversible’dır ( 2.,4.,5.,6.,7.,8.,9.,11. Reaksiyonlar ) yani iki yönlüdür. Birinci ve üçüncü reaksiyonlar ise ancak farklı enzimle reversible olabilirler ( Glukoz 6 fosfataz ve Fruktoz 1,6 bi fosfataz ).
Fosfo enol piruvat’tan ( PEP ), piruvat oluşturan 10. reaksiyon ise piruvat kinaz ile katalize edilir, geri dönüşümü tek bir hamlede olmaz, piruvat önce okzalaoasetat’a piruvat karboksilaz ile dönüşür, o da PEP karboksikinaz ile PEP’a geri dönebilir. Bu şekilde 1. , 3. ve 10. Reaksiyonların geri dönüşümü farklı farklı enzimlerle olur ve bu enzimler de ileriki konularda değineceğimiz Glukoneogenez yolunun enzimleridir.
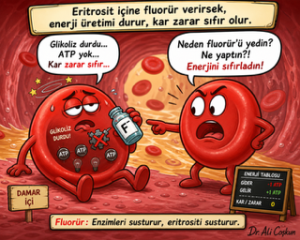
Karikatür 2B : Fluorür inhibisyonu.
Glikoliz yolunun tüm basamaklarını ayrı ayrı incelemeden önce bu bahis’de duymaya başlayacağımız, enzimler konusunda ise, teferruatlı olarak anlatacağımız, enzimin substrat’a olan affinitesi ile ters orantılı bir bağıntıya sahip Km değerini, kısaca şöyle tanımlayabiliriz : Km aslında reaksiyon sırasındaki özel bir andaki substrat konsantrasyonudur. Reaksiyon esnasında bu özel anda ne kadar çok substrat konsantrasyonu varsa, bunlar reaksiyona o kadar girmemiş yani enzim bunları reaksiyona sokmada o kadar nazlanmış demektir, dolayısıyla da enzim bu substrat’a o kadar isteksiz demektir.
Bu durumu iki karikatürle daha anlaşılır hale getirelim :
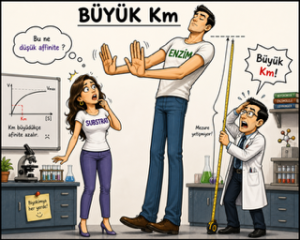
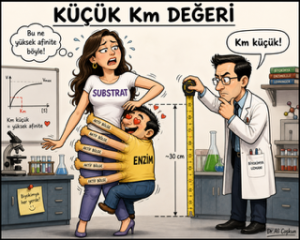
Karikatür 2C : Substrat ve Km ilişkisi.
Oysa bu özel anda ne kadar az substrat konsantrasyonu varsa, enzimimiz o kadar çalışkan ve substrat’a karşı o kadar affiniteli demektir. Yalnız burada bir husus da önem arzetmektedir o da : affinite terimi ile hız terimi birbirlerine karıştırılmamalıdır. Bir enzim bir substrat’a çok afiniteli, istekli olabilir ama onunla reaksiyonu aksine yavaş da olabilir. İkisi farklı ölçütlerdir. Prensip budur.
Özel andan kasıt : Reaksiyonda maksimum hızın yarısına eşit olan andır.Bir tepkimede başlangıçta substrat maksimum seviyededir, enzim etkidikçe reaksiyon hızı da artar, sonra enzim substrat arasında bir doygunluk meydana gelir. Bu nedenle enzim’in katalizlediği reaksiyon hızı ile substrat konsantrasyonunu gösteren grafikler aşağıdaki şekildeki gibi hiperbol tarzındadırlar. Km değeri de, azami reaksiyon hızının yani maksimum hızın yarısına eşit olan substrat konsantrasyonudur.
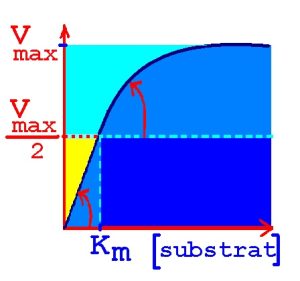
Şekil 6 : Km değeri.
Glikoliz’in 1. Basamağı :
Glikoliz, ATP harcatan ilk basamak ile başlar. Glukoz, hekzokinaz veya glukokinaz enzimi aracılığıyla 6. Karbon üzerine 1 mol fosfor alır ve Glukoz -6- Fosfat olur ( EYLÜL 1996 BİYOKİMYA TUS SORUSU ).
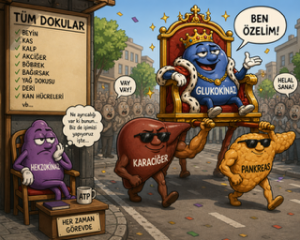
Karikatür 3A : Glukokinaz özel ve hızlıdır
Glikoliz’in birinci basamağı karaciğerde veya pankreas’da gerçekleşirse kullanılan enzim glukokinaz enzimidir ( Hekzokinaz tip 4 ). Karaciğer dışındaki dokulardaki birinci basamak reaksiyonunda kullanılan enzim ise hekzokinaz’dır. Bu önemli bir husustur. Bir noktayı daha belirtmek gerekirse : Kan şekerini regüle eden organ, insülin’in kaynağı pankreas değil, karaciğerdir.
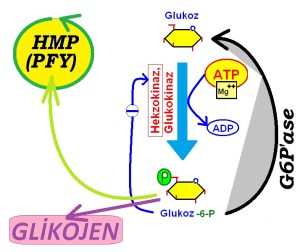
Şekil 7 : Glikolizin 1. basamağı.
Hekzokinaz’ın Km değeri düşük olduğundan glukoz’a affinitesi çok yüksektir. Affinitesi yüksektir yani glukozu hemen kapar ama reaksiyon hızı ( Vmax ) çok yavaştır.
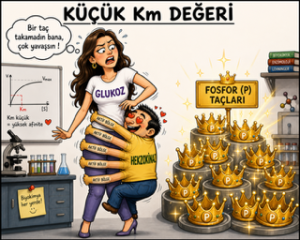
Karikatür 3B : Hekzokinaz yavaştır.Eğer karikatürde görüldüğü gibi olmasaydı, affinitesi yüksek olduğu için, fosforlama hızı da fazla olsaydı, doku dışına hiç bir glukoz, fosforlandığı için çıkamazdı.
Hekzokinaz çabucak kaptığı her glukozu yüksek hızda fosforilleyebilseydi, hücrenin ihtiyacı olup da kullanabileceğinden daha çok şeker, yani neredeyse hücredeki tüm şekerler gerekmediği halde fosforile hale gelirdi. İşte bu ‘’yeterli miktarı yani kafi dereceyi’’ de, hekzokinaz’ın bu Vmax yavaşlığı belirler.
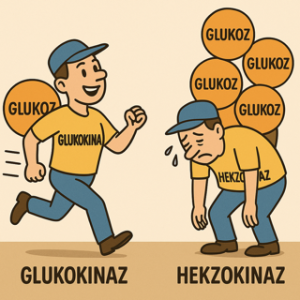
Karikatür 3D : Glukokinaz’ın glukoz’a affinitesi düşüktür ama az sayıdaki glukozu fosforlamada, hekzokinaz’a kıyasla çok hızlıdır.
Beyin dokusu glukoz eksikliğine çok duyarlı olduğundan, beyin dokusundaki hekzokinaz’ın Km değeri de, diğer dokulardaki hekzokinaz’ların Km değerlerinden daha düşüktür. Bu nedenle beyin dokusu da glukozu hemen kapar.
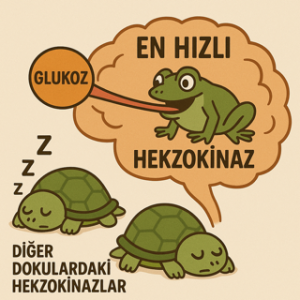
Karikatür 4 : Beyin dokusundaki Hekzokinaz’ın hızı ve diğer dokulardaki hekzokinazların glukoz’u kapmadaki hızlarının mukayesesi.
Aşağıdaki tasvirde hekzokinaz ve glukokinaz enzimlerinin, Km değerleri itibariyle glukoz’a affiniteleri kıyaslanmıştır. Glukoz’a pek düşkün olmayan glukokinaz’ın ancak tokluk durumlarında aktif olduğuna da dikkat ediniz.
Karikatür 5A : Yüksek Km’li Hekzokinaz’ın ve düşük Km’li glukokinaz’ın değerlerinin kıyaslanması.
Hekzokinaz, birinci basamakta oluşan ürün tarafından allosterik inhibisyona uğrayan tek glikoliz enzimidir. Hekzokinaz enzimi karaciğer ve pankreas’da yoktur.
Bir önemli ayrıntı daha vermek gerekirse : Glukoz -6-P , Hekzokinaz enzimini inhibe eder, fakat glukokinaz enzimini inhibe etmez. ( EYLÜL 2000 BİYOKİMYA TUS SORUSU ). Yani glukokinaz, allosterik inhibisyona uğramaz.
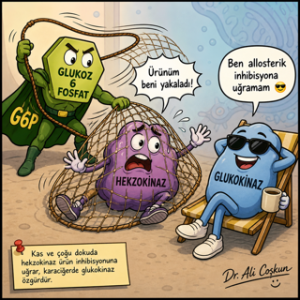
Karikatür 5B : Glukoz -6-P , Hekzokinaz enzimini allosterik inhibisyona uğratır.
Hekzokinaz’ın glukoza affinitesi , glukokinazdan çok daha yüksektir ( düşük Km ). Buna rağmen glukozu en çabuk glukokinaz parçalatır. Hekzokinaz’ın ortamdaki glukozlarda gözü vardır ama onun da bir sınırı vardır, çünkü yavaştır. Amacı hücreye giren glukozu fosforlamaktır ( yedek depo ). Enzim kinetiği yönünden glukokinaz’ın Vmax’ı, hekzokinaz’dan daha yüksektir. Bu durum aşağıdaki karikatürde de tasvir edilmiştir.
Karikatür 6A : Hekzokinaz’ın ve glukokinaz’ın Vmax değerlerinin kıyaslanması.
Glukokinaz ‘ın ise Km değeri yüksek olduğundan glukoz’a affinitesi düşüktür fakat yakaldığı glukozu hekzokinaz’dan daha çabuk fosforlar.
Glukokinaz ancak toklukta aktif olur ve allosterik inhibisyona uğramaz. Glukokinaz açlık’da kılını kıpırdatmaz, hiç harekete geçmez, ancak tokluk’da her tarafta yeterince glukoz var ise o zaman uyanır ve aktif olur. Glukokinaz zenginliği ( tokluğu ) sever, fakirliği ( açlığı ) sevmez.
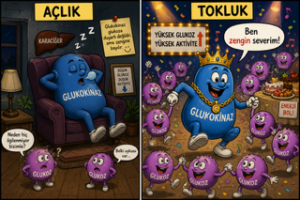
Karikatür 6B : Glukokinaz Zengin sever !
Glukokinaz, adından da anlaşılacağı gibi sadece glukoz için spesifiktir. Aşağıdaki şekilde de gösterildiği gibi, glikoliz’de 1. Basamak sonunda oluşan ürün, karbohidrat metabolizmasının merkezi bileşiği konumundaki : ( glukoz 6 fosfat ) Glukoz – 6 – P ‘dır.
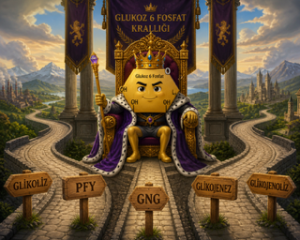
Karikatür 6C : Glukoz 6 Fosfat’ın önündeki yol seçenekleri
Çünkü Glikoliz, Glukoneogenez, Pentoz Fosfat Yolu ( PFY ), Glikojenez, Glikojenoliz ‘de her zaman ‘’baş aktör’’ rolü onda’dır.
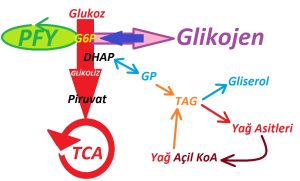
Şekil 8 : Merkezi bileşik Glukoz 6 fosfat ve vücutta birbirini etkileyen reaksiyonlar.
Glikoliz’in birinci basamağındaki HEKZOKİNAZ enzim defekti diğer hücrelerde problem yaratmazken, eritrositlerde membran harabiyeti yapar.
Glikoliz’in İkinci ve Üçüncü Basamakları :
Aşağıdaki şekil takip edildiğinde, önce Trioz fosfat izomeraz ile Fruktoz – 6 – Fosfat oluşur, sonra yine ATP harcayarak ve birinci karbon üzerine 1 mol fosfor daha alarak Fruktoz- 1, 6 Di Fosfat oluşur ( bi veya di denmesi tercih’e bağlıdır ).
Glikoliz yolundaki defektlerden TRİOZ FOSFAT İZOMERAZ eksikliğinde bu enzim en çok lökositleri etkiler, nöromüsküler sistemi etkiler.TRİOZ FOSFAT İZOMERAZ defektinde: LÖKOSİTLER’de, BOS’da ve KAS HÜCRELERİNDE bu enzim bulunmaz ve bu durumda NÖROLOJİK BOZUKLUKLAR görülür.
Resim 3 :TRİOZ FOSFAT İZOMERAZ eksikliği en çok lökositleri etkiler.
Üçüncü basamaktaki enzim Fosfo Frukto Kinaz 1 ( FFK 1 ) enzimidir ve sitrat ile bloke edilebilir, ATP ile de bloke edilebilir, oysa AMP ile aktive edilir, ayrıca sadece karaciğerde bulunan Fruktoz 2, 6 Bi Fosfat da, FFK 1 enzimini güçlü şekilde uyarır, dolayısıyla allosterik olarak glikolizi uyarır.
FFK – 1 enzimi, kan glukozu düşenlerde yani açlık’da, karaciğerde inhibe olur.
ATP harcanan her reaksiyon’da Mg++ ‘a da ihtiyaç vardır.Bu durumlar aşağıdaki şekilde de açıkca gösterilmiştir . Ayrıca enzim defektleri içersinde de olabilen Fosfofrukto Kinaz yetersizliğinde ise MİYOPATİ görülür. ( NİSAN 1994, MAYIS 2011 ve EYLÜL 2011-2 soru BİYOKİMYA TUS SORUSU ).
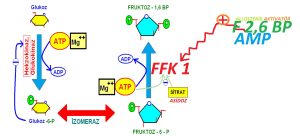
Şekil 9 : Glikoliz’in ilk 3 reaksiyonu.
Glikoliz’in 3. reaksiyonunda dört molekül ve bunların birbirlerinden farklı özelliklerini bilmek önemlidir. Bunlardan ikisi FosfoFrukto Kinaz enzimleri 1 ve 2 ( FFK 1, FFK 2 ), olurken, diğer ikisi de Fruktoz 1,6 difosfat ( F1,6 BP ) ve Fruktoz 2,6 di fosfat ( F2,6 BP )’dır. Üçüncü reaksiyonu gerçekleştiren enzim FFK 1 enzimi ve oluşan ürün F1,6 BP’dır.
Kişi yemek yedikten sonra yani tokluk durumunda, insülin salgılandığından, insülin etkisinde glikoliz o kadar yüksek bir hıza ulaşır ki, bu basamakta fazla substartlardan alternatif 2. Bir reaksiyon daha oluşur : Bu da FFK 2 enziminin katalizlediği F2,6 BP ürününün oluştuğu ‘’paralel’’ bir reaksiyondur. Bu durum aşağıda detaylı olarak tasvir edilmiştir. Aslında açlık nasıl tokluk ile dengeleniyorsa, glikoliz de glukoneogenez ile dengelenmektedir. Bu iki farklı durum nasıl birbirine zıt çalışıyorsa, bu durumlardan hangisinin daha baskın olduğunu anlamaya yarayan molekül : F2,6 BP konsantrasyonudur.
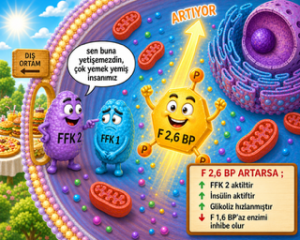
Karikatür 7A : Hücre içinde F 2,6 BP çok ise glukoneogenez yok, glikoliz baskındır.
Hücre içinde F2,6 BP konsantrasyonu artmışsa : Hücre içinde glukoz fazladır, tokluk durumunu ifade eder; insülin hakimiyeti vardır; insülin, FFK 2 enzimini aktive eder ; glikoliz baskındır; F2,6 BP artışı, fruktoz 1,6 bi fosfat’az enzimini de inhibe eder.
Hücre içinde F2,6 BP konsantrasyonu azalmışsa : Hücre içinde glukoz yok denecek kadar azdır, açlık durumunu ifade eder, glukagon hakimiyeti vardır, glukagon fruktoz 2,6 bi fosfataz ( F2,6 BP’az ) enzimini uyarır, böylece glukoneogenez artar, glikoliz inhibe olur.
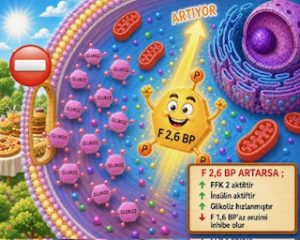
Karikatür 7B : Hücre içinde F 2,6 BP, glukoz marker’ıdır.
Dolayısıyla F 2,6 BP molekülü, hücre içi glukoz konsantrasyonunu haber veren bir marker molekül veya sinyal molekülü görevini yürütür.
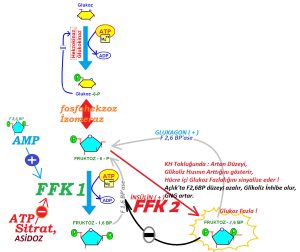
Şekil 10 : Hücre içi glukoz için marker molekülü : Fruktoz 2,6 Bi fosfat .
Glikoliz’in dördüncü , beşinci ve altıncı basamakları :
Oluşan Fruktoz-6-Fosfat ve ondan oluşan Fruktoz 1,6 Di Fosfat’ın hepsi, önceki basamaktakiler gibi 6 karbonludur. Bundan sonra yani 3. Basamaktan sonra yola 3 karbonlular ( trioz ) devam eder ama 2 mol olarak, yani 2 kat olarak. Bu çok önemli bir ayrıntıdır.
İki mol trioz yapan enzim ALDOLAZ A’dır. Bu durumu kolay akılda kalması için aşağıdaki karikatür şeklinde zihnimizde canlandırabiliriz. Böylece daha zor unuturuz. ‘’ Aldı laz eline baltayı ‘’ cümlesiyle aldolaz A enzimi çağrıştırılır, kesilmesi gereken odun ise 6 karbonlu fruktoz 1,6 di fosfat ‘dır. Aldı laz eline baltayı cümlesinden sonra, zihinde canlandırılan şey odunun iki parçaya bölünmesidir. Parçalar 3’er karbonludur, birisi gliseraldehid 3 fosfat ( GA3P ) diğeri ise dihidroksi aseton fosfat ( DHAP )’dır.
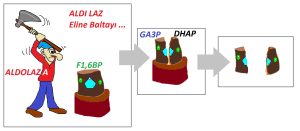
Karikatür 7C : Adolaz A ( Aldı laz eline baltayı… ) karikatürü.
Aldolaz A’nın glikoliz’in 4. Basamağında ikiye yarıcı enzim olduğunu anladıktan sonra, 5. Basamağın da iki ayrı parçanın aynı ( izo ), tek bir parça haline getirilmesi de izomeraz enziminin kontrolünde olur ( Trioz fosfat izomeraz ). Böylece 4. Basamakta önce 3 karbonlu iki farklı moleküle aldolaz A etkisiyle dönüşen F1,6 BP, 5. Basamakta yeniden birleşip yine 3 karbonlu ama, aynısından çift molekül haline gelir ( 2 mol GA3P ). Eğer organizmanın glikoliz ihtiyacı varsa glikoliz bu yeni oluşan 2 mol GA3P üzerinden devam eder. Eğer organizmanın glikoliz ihtiyacı yoksa bu sefer de yine aynı enzim ( trioz fosfat izomeraz ) 2 mol DHAP oluşturur ve böylece DHAP daha az metabolize olacağı için, anabolizmaya bir katkı sağlamaz. Aşağıdaki şekilde bu durum ayrıntılı olarak gösterilmiştir.
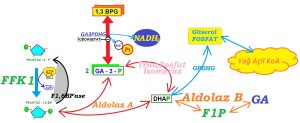
Şekil 11A : Glikoliz’de 3., 4., 5., ve 6. Reaksiyon basamakları.
İzomeraz ( Trioz Fosfat İzomeraz ) enzimi ile de birbirlerine çevrilirler ( 5. Basamak ). Glikoliz, bundan sonraki hayatına 2 mol Gliseraldehid -3-Fosfat üzerinden ilerleyerek devam eder. Bu molekül üzerinden Dehidrogenaz ( GLİSERALDEHİD 3 FOSFAT DEHİDROGENAZ ) enzimi ile 1,3,Bi Fosfo Gliserat ( 1,3 Di fosfogliserat = 1,3 BPG = 1,3 DPG ) oluşur ( 6. Basamak ).
Altıncı basamakta kulanılan dehidrogenazın spesifik inhibitörü İODOASETAT ‘dır.
İodoasetat’ın inhibisyon etkisinden dolayı glikoliz de durur ve dolayısıyla da iodoasetat, glikolizin de inhibitörüdür( EYLÜL 1999 BİYOKİMYA TUS SORUSU ).
Dehidrogenaz enziminin koenzimi NAD+’dir. Koenzim NAD+, enzimle Sistein kalıtının SH grubundan bağlanır.
Altıncı basamakta oluşan 1,3 DPG, Yüksek enerjili bileşiktir. Bilinen belli başlı DİĞER yüksek enerjili bileşikler : ATP, Kreatin Fosfat, PEP, karbamoil fosfat, Arjinin Fosfat, SÜKSİNİL KoA’dır ( NİSAN 1988, 1997 ve EYLÜL 1989, 1997 BİYOKİMYA TUS SORULARI ).
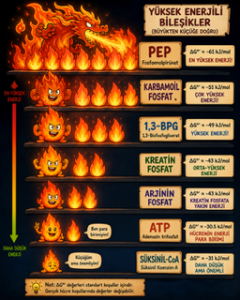
Şekil 11B : Bilinen belli başlı yüksek enerjili bileşikler
TCA ( Sitrik asit ) siklusunda oluşan Süksinil KoA, Süksinat’a dönüşürken sadece karaciğer ve böbrekte GTP sentezi yapar, diğer dokularda ise ATP sentezi yapar.
Aşağıdaki şekilde glikoliz’in dördüncü, beşinci ve altıncı reaksiyonlar gösterilmiştir, bu reaksiyonlar sonucunda 2 mol NADH2 oluştuğunu da dikkate almak gereklidir.
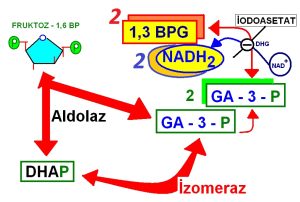
Şekil 12 : Glikoliz’de 4., 5., ve 6. Reaksiyon basamakları.
Glikoliz’in yedinci , sekizinci ve dokuzuncu basamakları :
Oluşan Yüksek enerjili 2 mol 1,3 BPG ( trioz, 3 karbonlu ), FOSFOGLİSERAT KİNAZ enzimiyle yıkılırsa 2 mol ATP oluşturur, yani substrat düzeyinde ATP sentezi olur ( substrat düzeyinde fosforilasyon, EYLÜL 2004-2 soru BİYOKİMYA TUS SORUSU ) ve 3 Fosfogliserat’a yıkılır. 3 PG da, 2 PG’a yıkılır, 2 PG da ENOLAZ enzimiyle PEP’a çevrilir. Bu reaksiyonlar tersinirdirler.
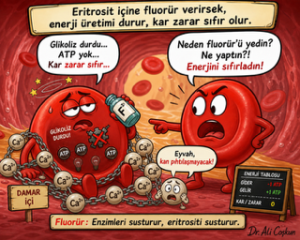
Karikatür 7B : Flurid Blokajı karikatürü.
ENOLAZ enzimi, eğer ortamda FLUORİD var ise Fluorid ile BLOKE edilir. Glikolizi bloke eder.Fluorid veya Fluorür aynı zamanda kalsiyum’u bağlayarak kanı pıhtılaşmaz hale getirir, 1 ml kan için 10 mg Fluorid antikoagülan olarak yeter, Fluorid’in Antikoagülan olarak heparin ile birlikte kullanılması, özellikle kan örneği 3- 4 saat sonra laboratuvarımıza ulaşacaksa ve glukoz ölçülecekse, en isabetli seçimdir( NİSAN 2000, MAYIS 2011 ve EYLÜL 2001 BİYOKİMYA TUS SORULARI ).
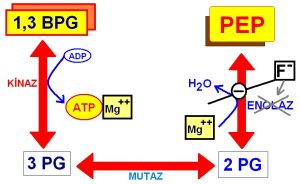
Şekil 13 : Glikoliz’in yedinci , sekizinci ve dokuzuncu basamakları
Oluşan PEP ( Fosfo Enol Piruvat ) , Yüksek enerjili bileşiktir. Aşağıdaki şekilde bazı yüksek enerjili bileşiklerin enerji güçlerini birbirlerine göre kıyaslayacak şekilde değişen büyüklükte tasvirleri yapılmıştır. Burada amaç: PEP’ın ATP’den bile daha fazla bir enerjiye sahip molekül olduğunun gösterilmesidir. Hatta aşağıdaki şekilde gösterilen moleküller arasında ATP en az enerjiye sahiptir. Bu durum da dikkat çekicidir. Glikolizde oluşan diğer molekül olan 1,3 BPG da kıyaslama’da ATP’den daha fazla enerjiye sahiptir.
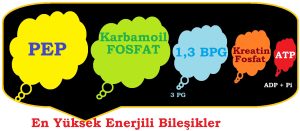
Şekil 14 : Yüksek enerjili bileşikler’de PEP ve 1,3 BPG’ın ATP’ye kıyasla durumu
Eğer ortamda Arsenik ( As ) var ise : 1,3 BPG olağan seyrinde yıkılamaz, şu şekilde bir tepkime olur : As, 1. Karbondaki inorganik fosfatın yerini alarak, ATP oluşturmaz, oksidatif fosforilasyonu inhibe eden bir zehirdir Arsenik, ATP oluşumunu engeller ve 3 PG ile birleşir, ısı çıkar. Arsenik bir çok toksik etki gösterir : Bunlar, Dihidrolipoik asidi bağlaması, proteinlerin SH gruplarını bağlaması, HEME sentezini inhibe etmesi gibi sıralanabilir. Hücreye fosfor transferine ise etki etmez. Aşağıda bu durum şekille gösterilmiştir. ( NİSAN 2009 ve EYLÜL 2002 BİYOKİMYA TUS SORULARI ).
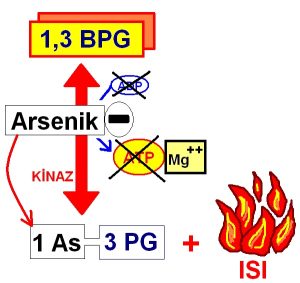
Şekil 15 : Glikoliz’in Arsenik ilaveli yedinci basamağı.
Oluşan 1As-3 PG, Glikolizi bu noktada bloke eder.
Eğer ortamda Arsenik yoksa, PEP rahatlıkla oluşur ve PEP, yüksek enerjili bir bileşik olduğundan , irreversibl olarak Enol Piruvat’a ve o da spontan olarak Keto piruvat’a dönüşür. Bu reaksiyon da glikoliz’in 10. Reaksiyonudur. Aşağıdaki şekilde PEP, piruvat kinaz enzimi ile piruvat’a dönüşürken oluşan substrat düzeyinde fosforilasyon görülmektedir. İnsülin bu enzimi uyarır, Fruktoz 1,6 BP da bu enzimi uyarır ( feed forward ). Feed forward’dan kasıt : glikoliz’in ön basamaklarında oluşan fruktoz 1,6 bi fosfat’ın ileriki basamaklardaki piruvat kinaz enzimini uyarmasıdır. Alanin ise bu enzimi durdurur.
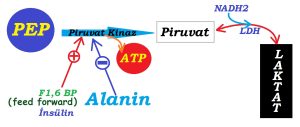
Şekil 16: Piruvat Kinaz basamağını etkileyen faktörler.
Eritrosit Glikoliz yolu Enzim Defektleri’nden en sık görülen
( neredeyse tamamında ) Piruvat Kinaz Enzim Defekti ( Eksikliği ) :
Eritrositler olgunlaşırken, nükleuslarını, ribozomlarını, mitokondrilerini ve bazı yeteneklerini ( protein sentezi, oksidatif fosforilizasyon ) kaybederler. Asgari metabolik yollar kendisinde kalır. Bu yollardan en önemlisi Embden – Meyerhof yani Glikoliz’dir. Aşağıdaki şekilde piruvat kinaz eksikliği reaksiyon olarak tasvir edilmiştir. Şekil incelenirse soluk ve açık renkli olarak renklendirilenler enzim defekti nedeniyle oluşamayacak moleküllerdir.
Glikolizdeki PİRUVAT KİNAZ ( PEP’den Piruvat oluşturur ) eksikliği diğer hücrelerde bir rahatsızlık olgusu oluşturmazken, gerçek patolojisini eritrosit membranlarında yapar. Eritrosit Glikoliz yolu Enzim eksikliğinin neredeyse tamamı PİRUVAT KİNAZ eksikliğidir.
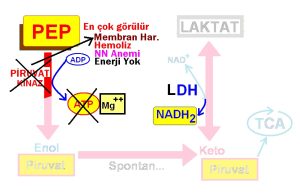
Şekil 17 : Piruvat Kinaz enzim defektinde reaksiyonun durduğu yer.
Yukarıdaki şekildeki reaksiyondan da anlaşılacağı gibi, piruvat kinaz enzim defektinde ATP oluşamayacaktır. Yani eritrositin enerjisi bitecektir. Enerjisi biten eritrosit, kendi yaşamının idamesi için gerekli fonksiyonları gücü olmadığı için yerine getiremeyecektir.
Bu fonksiyonlardan en çok zarar görenlerin başında da eritrosit membranı ( ghost ) gelmektedir. Membran’ın parçalanmadan, frajil olmadan, elastikiyetini koruyarak ve her şekle uyum sağlayarak her türlü damar çeperinden, porlardan geçmesi elbette bir enerji gerektirir. İşte bu enerji piruvat kinaz defektinde oluşamayacaktır ve membrandaki pompa görevi yapan proteinler, porlar, enerji olmadığı için çalışamayacak, membran bütünlüğü yetersiz enerji nedeniyle bozulacak, hemoliz olacaktır. Bu nedenle piruvat kinaz enzim defektlerinde hemoliz sık görülür. Membran bütünlüğü bozulan eritrosit ise dalak makrofajları için mükemmel bir yemek halini almaktadır. Tabi bu durum nedeniyle bu turnover çok kısa peryotlarla olur ve eritrosit ortalama ömrünü oldukça kısaltır. Retikulositoz, NN ( Normokrom Normositer ) hemolitik anemi görülür. Şunu da belirtmek gerekir ki hemolitik anemi nedeni olabilecek enzim defektlerinin başında Glukoz 6 fosfataz dehidrogenaz ( G6PD ) enzim defekti gelmekte, ikinci sıklıkta da piruvat kinaz enzim defekti gelmektedir. Piruvat kinaz enzim defektlerinde görülen hemolitik anemiler genellikle kronik’dir.
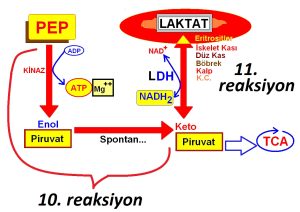
Şekil 18 : Glikoliz’in onuncu ve onbirinci basamakları
Anaerobik ortamda : Ketopiruvat, laktat dehidrogenaz ( LDH ) enzimiyle, 11. Reaksiyonla Laktat’a dönüşür. Bu durum muhtevasında mitokondri olmayan Eritrositler için çok önemlidir, Bu nedenle eritrositler glukozdan minimum enerji elde ederler, o da ancak kanda öylece akıntıya kapılarak sürüklenmelerine yeter ( EYLÜL 1996 BİYOKİMYA TUS SORUSU ). Fakat Laktat’a dönüşüm reversibl’dır.
Metabolizma aerobik ortamda ise : Organizmanın ihtiyacı gereği Keto Piruvat , TCA siklusuna girer.
Karikatür 8A : Aerobik ortamda Piruvat, TCA siklusuna girer.
Yukarıdaki Şekil 18’de PEP yıkılışı gösterilmiştir.Özellikle egzersizlerde çabuk enerji kullanımına ihtiyaç olacağından kaslarda Laktik asid’e kadar yıkım da olabilir ve kana laktik asit geçer. Kandaki laktik asit artışının bir kaynağı da mitokondrisiz eritrositlerdir, glikoliz’in eritrositlerdeki son durağı laktik asit’tir ( NİSAN 2005 BİYOKİMYA TUS SORUSU ).
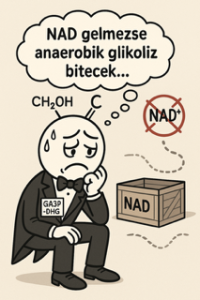
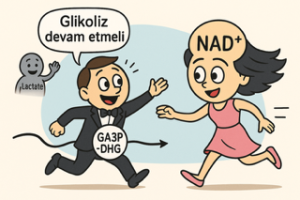
Karikatür 8B : Anaerobik Glikoliz’in devamı için NAD şarttır.
Bir önemli nokta da yukarıdaki şekildeki karikatürde anlatıldığı gibi : Anaerobik glikoliz’de glikoliz’in devamının sağlanmasıdır ki burada da kilit enzim GA3PD ( Gliseraldehid 3 P Dehidrogenaz veya GA 3 P DHG ) enzimi’nin devamlı aktif olabilmesi için ihtiyaç duyduğu NAD+ koenziminin bir kaynaktan kendisine devamlı gelmesi lazımdır. Bu kaynak da aşağıdaki şekilde gösterildiği gibi Piruvat’tan Laktat oluşturan reaksiyondan elde edilen NAD+’dir.
Metabolizma oksijensiz ortamın neden olduğu mecburi anaerobik glikoliz gibi olumsuz koşullarda bile, glikoliz’in yaşam enerjisi olan NAD+’yi laktat oluşturmak suretiyle üretmekte, böylece yaşamın devamı için gereken enerjiyi sağlamaya çalışmaktadır ( NİSAN 1998, MAYIS 2011 BİYOKİMYA TUS SORULARI ).
Laktat seviyesi beslenmeyle akut olarak değiştirilemez.Ancak ve ancak, OKSİJEN OLMAYAN ORTAMDA laktat oluşur fakat, bu durum dahi metabolizmanın kontrolü altındadır, sözgelimi uzun süreli açlıklar bile kan laktat sevyesini değiştirecek güce sahip değildir, kan laktat seviyesi bu durumda bile sabit halde tutulma eğilimindedir.
Laktat oluşumuna etki eden tek olay oksijen’in olmayışıdır. Aşağıdaki şekilde laktat’ın anaerobik glikolizdeki substrat’ı yani kaynağı olan piruvat’ın laktat’a dönüşümü ve diğer alternatif dönüşümleri gösterilmiştir. Piruvat tek bir reaksiyonla 4 adet moleküle çevrilebilir. Bunlar Asetaldehid, alanin, okzaloasetat, asetil KoA ve laktat’dır. Alkol’e ve fosfo enol piruvat’a ise 2 basamakta dönüşebilir.
Aşağıdaki Karikatüre odaklanırsak genel olarak piruvat’ın dönüştüğü diğer moleküller gösterilmiştir.Anaerobik yola girilmediği takdirde piruvat önemli bir merkezi moleküldür. Mitokondri içersinde oluşan basamaklar sarı yeşil figür içersinde gösterilmiştir. Organizmanın metabolik eksikliğine göre ve o anki tercihine göre piruvat 5 farklı yola girebilir. Buna piruvat’ın akıbet seçenekleri diyebiliriz.
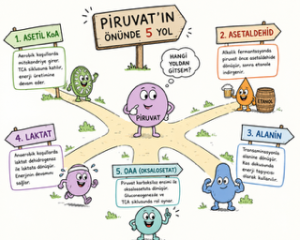
Karikatür 8C : Piruvat 5 farklı yola girebilir.
LDHG ( Laktat Dehidrogenaz ) ile laktat’a dönüşüm anaerobik bir seçenektir.Anaerobik seçenek dışındaki seçeneklerden, mitokondri içinde biyotinli enzim piruvat karboksilaz’ın kullanıldığı glukoneogenez’in ilk basamağı ( irreversible ), glukoneogenez konusunda ayrıntılı olarak anlatılacaktır.
Piruvat’ın mitokondri içerisindeki piruvat dehidrogenaz ( PDH ) basamak seçeneğindeki oluşan TCA’ya giriş bileti olan Asetil KoA oluşumu, aynı zamanda piruvat’ın glukoneogenez’e giriş seçeneği olan piruvat karboksilaz enzimini uyarmaktadır.
Tiyamin eksikliğinde veya beri beri hastalığında piruvat, alkole çevrilemez, ayrıca asetil KoA’ya çevrilemez. Böylece laktat oluşum şansı artar.
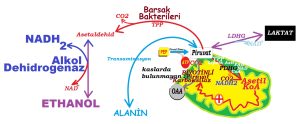
Şekil 19 : Piruvat’ın akıbet seçenekleri.
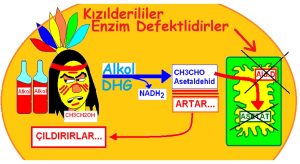
Yukarıdaki şekilde barsak bakterilerinde piruvat’dan iki basamakta koenzim tiyamin Piro Fosfat ile 6. LDH enzimi olarak bilinen Alkol Dehidrogenaz ile alkol oluşumu gösterilmiştir. Bu reaksiyon maya metabolizmasında da görülebilir. Bu reaksiyonun tersi, alkol alan kişilerde alkol metabolizmasında çok önemlidir. Aşağıdaki şekilde Alkol’ün akut ve kronik alımındaki metabolizması tasvir edilmiştir. Alkol’ün metabolizmasında ilk enzim Alkol Dehidrogenaz, ikinci enzim ise Aldehid Dehidrogenaz’dır.
Bu iki enzim sayesinde alınan alkol asetat’a kadar yıkılır. Alkol dehidrogenaz erkeklerde daha aktif, kadınlarda ise daha tembeldir. Bu nedenle kadınların alkol tahammülsüzlüğü daha fazladır. Alınan alkol’ün çoğu mide mukozasında bulunan alkol dehidrogenaz ile önce asetaldehid’e çevrilir. Bu reaksiyon bol miktarda NADH2 üretir. Bu aşamada NADH2’nin bolca üretilmesi beta- oksidasyon yolunu inhibe etmektedir. Çünkü beta oksidasyonun da ürettiği FADH2 ve NADH ‘dır. NADH2’nin olması enerji fazlalığını gösterdiğinden yağların okside olmasını sağlayan beta oksidasyona ihtiyaç yoktur.
Beta oksidasyonun durması ile karaciğerde aşağıdaki şekilde gösterildiği gibi yağlanma artar, glukoneogenez tahrip olur ve sonucunda hipoglisemi meydana gelir.
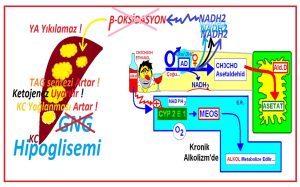
Şekil 20 : Alkol alanlarda görülen etkiler ve alkolün metabolize edilişi.
Alkol akut kullanımda alkol dehidrogenaz ve mitokondride aldehid dehidrogenaz ( Ald. D ) enzimleri tarafından metabolize edilmeye çalışılırken, kronik alkolizm’de alkol’ün metabolizması için daha çok endoplazma retikulumda sitokrom oksidaz P-450’ye bağımlı çalışan ( sit.oxd. 2E1 ) mikrozomal enzim etanol oksitleyici sistemleri ( MEOS ) kullanılır. Bu durum yukarıdaki şekilde gösterilmeye çalışılmıştır.
Bazen alınan bazı ilaçlar ( barbitürat ) alkolü parçalamaya çalışan aynı enzim ile metabolize olmaya çalışırlar. Bu durumda bu ilaçlar beklemeye alınır ve önce alkol parçalanır ve bu da ilacın vücuttaki etkisini artırabilir.
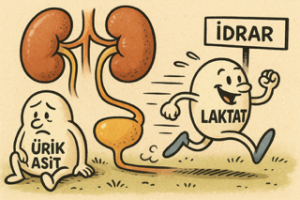
Burada önemli bir konuda alkol’ün akut olarak metabolizmasında kullanılan alkol deghidrogenaz ( AD, veya Alkol DHG ) enziminin ortaya çıkardığı NADH2 artışı, piruvat’ı laktat’a yıkmaya mecbur kılar ve laktat artar. Laktat’ın artışı, idrarı daha da asidik yapar ve idrara atılmak için yarıştığı ürik asidi bu yarışta geçer. Sonuçta laktat idrara çıkarken, ona yarışta geçilen ürik asit, idrarla atılmaz ve kanda birikir. Alkol alan hastalarda gut krizleri atak yapabilir.